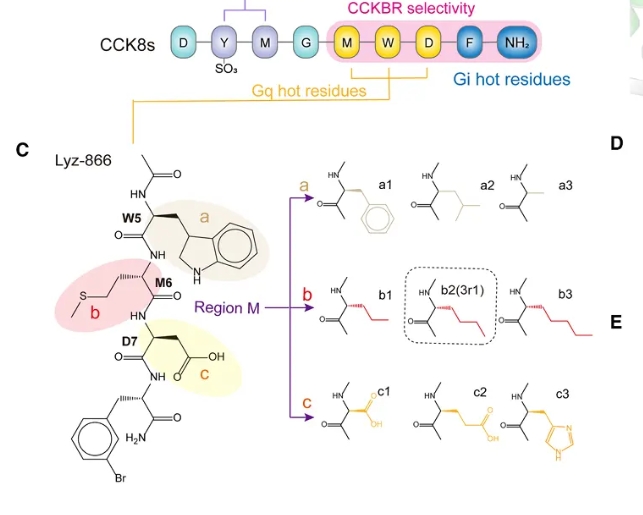
分子动力学(cell)--靶向CCKBR通路的选择性偏向性激动策略在阿尔茨海默病治疗中的机制研究
### 作者,Evil Genius ### 接下来要为我们的生化小课,分子对接/分子动力学做好准备,我自己做了一个合集,在[分子动力学](https://mp.weixin.qq.com/mp/appmsgalbum?__biz=Mzg2MDY1NTYyOQ==&action=getalbum&album_id=4563499736439504899#wechat_redirect),大家感兴趣可以看看,那是那句话,我们先把事情做好,再说其他的事情。 ### 我们任何人都一样,学习一些内容要认真学,学会,不达目的不罢休,不学就彻底不学,好好玩一玩,养好身体,放松心态,不要半学不学,一知半解这个状态,两头都不沾,浪费时间精力金钱,最后还是不会。 ### 我一个没工作,更不可能有编制的人,都在学习这些内容,有没有收益我根本不知道;但是大家如果在学生时代,或者编制内,学习这些生信内容的价值不可估量,我是错过了,研究生的方向一点都不感兴趣,平台也比较低,也没人带,天天易错PCR筛选突变体,一点技术含量都没有,搞得自己以后再也不想做实验了,现在学习的内容才明白当初的自己是多么的low;大家如果在课题组,有人带,有资源,自己再学习一点,起点真的高出普通人太多了。 ### 如果想着先工作几年,或者做科研助理等名额,基本走不通。 ### 今日参考文献  ### 知识积累 ### 表达于内嗅皮层(entorhinal cortex, EC)中的胆囊收缩素B型受体(cholecystokinin B receptor, CCKBR)在记忆和学习过程中发挥重要作用。本研究发现,与CCKBR-Gi信号通路不同,CCKBR-Gs和CCKBR-Gq信号通路对阿尔茨海默病(Alzheimer’s disease, AD)的治疗具有积极作用。 ### 在临床研究中,发现,AD病情越严重的患者,其CCKBR-Gq信号活性越低。通过冷冻电镜(cryo-electron microscopy, cryo-EM)技术,本研究解析了CCKBR与内源性激动剂硫酸化胆囊收缩素八肽(sulfated CCK8, CCK8s)以及3种不同G蛋白亚型复合物的结构,揭示了受体不同构象状态如何决定其对特定G蛋白的选择性偏向(G protein bias)。 ### 基于这些结构信息,理性设计并开发了多种CCKBR合成偏向性激动剂(synthetic biased agonists),其中包括: ### Gi偏向性激动剂(Gi-biased agonist)——z-44 ### Gq偏向性激动剂(Gq-biased agonist)——3r1 ### 值得注意的是,3r1表现出了显著的治疗潜力: ### 在5×FAD阿尔茨海默病小鼠模型中改善了认知功能下降; ### 减少了脑内β-淀粉样蛋白(amyloid-β, Aβ)斑块数量; ### 通过上调: ### α-分泌酶ADAM10(α-secretase) ### 钙信号分子PLCB4(phospholipase C beta 4) ### 促进了长时程增强(long-term potentiation, LTP),从而增强突触可塑性和学习记忆能力。 ### 学习(learning,指获取知识的过程)和记忆(memory,指保持信息的能力)是人脑的两项基本功能,它们受到特定脑区中神经递质/神经肽信号通路的调控。神经递质或神经肽的减少,以及其受体表达水平下降,尤其是在老年人群中,可能导致记忆功能障碍。 **胆囊收缩素(cholecystokinin, CCK)**是大脑中含量最丰富的神经肽之一,广泛分布于: ### 新皮层(neocortex) ### 杏仁核(amygdala) ### 丘脑(thalamus) ### 海马(hippocampus) ### 内嗅皮层(entorhinal cortex, EC) ### CCK参与神经传递,并调控多种脑功能,包括: ### 情绪调节 ### 学习和记忆 ### 焦虑 ### 恐惧反应 ### 其中,内嗅皮层(EC)是CCK高度富集的脑区,其主要功能是作为海马和新皮层之间的信息传递枢纽。此外,EC中大多数细胞均表达CCK。 ### CCK信号对学习和记忆的重要性体现在: ### Cck基因敲除小鼠 ### 在被动回避实验(passive avoidance task)中表现更差; ### 在Morris水迷宫(MWM)实验中出现空间记忆损伤。 ### 此前研究发现: ### EC参与听觉皮层人工视听记忆痕迹的编码和提取; ### 激活EC来源的CCK能神经元能够诱导: ### 长时程增强(LTP) ### 神经可塑性 ### 此外,CCK与CCK B型受体(CCKBR)的相互作用对于: ### 高频刺激诱导的LTP; ### 声音-声音关联记忆形成; ### 具有关键作用。 ### CCK存在多种神经肽变体,可激活不同G蛋白信号,包括: ### Gs ### Gq ### Gi ### 其中: ### 硫酸化CCK8(CCK8s)是脑内最丰富的CCK形式。 ### CCK与阿尔茨海默病(AD)的关系 ### 内嗅皮层(EC)是阿尔茨海默病早期受损的重要区域,其特点包括: ### 神经原纤维缠结(neurofibrillary tangles)最早积累; ### 神经毡丝(neuropil threads)形成; ### 脑区萎缩; ### 神经元丢失。 ### 这些都是AD早期典型病理改变。 ### 此前研究发现: ### 反复给予CCK8s能够增强老年大鼠的空间学习和记忆能力。 ### 因此作者提出假设: ### 补充外源性CCK8s,增强CCK信号,可能具有改善AD进展的治疗作用。 ### 围绕CCKBR在AD中的作用开展研究: ### 1. 分析AD过程中CCKBR信号变化 ### 研究: ### AD患者和动物模型中CCKBR活性变化; ### 不同G蛋白信号通路(Gs/Gq/Gi)的作用。 ### 2. 研究CCKBR激动剂治疗AD的效果 ### 比较不同偏向性激动剂: |激动剂|信号偏向|作用| | --- | --- | --- | |z-44|Gi偏向|无明显AD改善作用| |3r1|Gq偏向|改善AD模型认知功能| ### 3. 解析CCKBR结构机制 ### 利用: ### 冷冻电镜(cryo-EM) ### 解析: ### CCK8s-CCKBR-Gs复合物; ### CCK8s-CCKBR-Gq复合物; ### CCK8s-CCKBR-Gi复合物。 ### 揭示: ### 不同CCKBR构象决定其选择性激活不同G蛋白通路。 ### 4. 基于结构设计偏向性药物 ### 利用结构信息设计: ### Gi偏向性CCKBR激动剂:z-44 ### Gq偏向性CCKBR激动剂:3r1 ### 结果发现: ### Gq信号激活具有治疗AD潜力,而Gi信号可能没有明显获益。 ### 文章核心逻辑 ``` CCK8s ↓ CCKBR受体 ↓ 选择性激活不同G蛋白 ↓ Gs / Gq → 神经保护、突触增强、LTP ↑ → 记忆改善 Gi → 无明显治疗作用 ↓ Gq偏向性激动剂3r1 ↓ ADAM10 ↑ PLCB4 ↑ Ca2+信号增强 ↓ LTP增强 ↓ Aβ斑块减少 ↓ AD小鼠认知改善 ``` ### 结果1、CCK通过激活脑内CCKBR缓解记忆衰退 ### 1. AD过程中CCK/CCKBR信号发生改变 ### 由于内嗅皮层(entorhinal cortex, EC)是AD最早发生病理改变的脑区之一,研究者首先分析AD进展过程中CCK信号变化。 ### 在晚期AD模型 5×FAD小鼠中发现: ### EC区域CCK表达下降约90% ### 与年龄匹配的正常小鼠相比显著降低; ### 相反: ### 海马和皮层区域CCKBR受体表达升高。 ### 说明: ### AD过程中,CCK配体减少,但CCKBR受体出现代偿性增加。 ### 2. CCKBR缺失导致学习记忆障碍 ### 研究CCKBR敲除小鼠: ### Cckbr-/- 小鼠 vs Cckbr+/+小鼠 ### 发现: ### 学习能力下降; ### 记忆能力下降; ### 海马和皮层区域LTP(长时程增强)减弱。 ### 提示: ### CCK-CCKBR信号缺陷与AD中的记忆损害密切相关。 ### 3. 外源性CCK8s可以保护神经元 ### 研究假设: ### 增强CCKBR活性可能减缓AD进程并保护神经元。 ### 但是: ### CCK8s不能穿过血脑屏障(BBB); ### 长期硬膜外给药可能造成脑损伤。 ### 因此作者首先进行了体外实验。 ### Aβ诱导神经损伤模型 ### 使用: ### Aβ42处理原代皮层神经元 ### 结果: ### Aβ42 → 神经元存活率下降 ### 加入CCK8s: ### → 显著恢复神经元活性 ### 说明: ### CCK8s具有抵抗Aβ神经毒性的保护作用。 ### 4. CCK8s作用依赖CCKBR,而不是CCKAR ### 为了确定CCK受体类型: ### 阻断: ### CCKBR ### 使用: ### CCKBR拮抗剂 L365260 ### CCKBR shRNA敲低 ### 结果: ### → CCK8s神经保护作用明显下降。 ### CCKAR ### 使用: ### CCKAR拮抗剂 devazepide ### CCKAR shRNA敲低 ### 结果: ### → 不影响CCK8s保护作用。 ### 因此: ### CCK8s主要通过CCKBR发挥神经保护作用,而非CCKAR。 ### 5. CCKBR激活多个G蛋白信号 ### CCKBR属于GPCR受体,可以激活: ### Gs ### Gq ### Gi ### 通过: ### cAMP检测(Gs) ### AP-TGFα shedding检测(Gq) ### cAMP抑制实验(Gi) ### 发现: ### CCK8s能够同时激活CCKBR下游: |信号|激活情况| | --- | --- | |Gs|↑| |Gq|↑| |Gi|↑| ### 6. Gs和Gq负责神经保护,Gi作用相反 ### 进一步使用不同抑制剂: ### 阻断Gs: ### 药物: ### NF449 ### 结果: ### → CCK8s保护作用消失 ### 阻断Gq: ### 药物: ### PLC抑制剂U73122 ### 结果: ### → CCK8s保护作用消失 ### 阻断Gi: ### 药物: ### 百日咳毒素(PTX) ### 结果: ### → 神经元存活进一步增加 ### 说明: |信号通路|对AD保护作用| | --- | --- | |CCKBR-Gs|有益| |CCKBR-Gq|有益| |CCKBR-Gi|不利| ### 7. Gs/Gq促进神经结构恢复 ### 利用: ### Gnαq flox小鼠 ### Gnαs flox小鼠 ### Cckbr-Cre病毒 ### 特异性降低CCKBR神经元中的: ### Gs表达 ### Gq表达 ### 结果: ### 降低Gs/Gq: ### ↓ ### CCK8s保护作用消失: ### 轴突长度恢复下降; ### 树突棘形成减少; ### 细胞存活降低。 ### 说明: ### CCKBR介导的神经保护依赖Gs和Gq,而不是Gi。 ### 8. AD患者中CCKBR-Gq信号下降 ### 研究者进一步分析78名AD患者脑脊液(CSF)。 ### 分组: |组别|人数| | --- | --- | |轻度AD|39例| |重度AD|39例| ### 检测脑脊液多肽成分激活CCKBR能力。 ### 结果: ### CCKBR-Gq信号: ### 重度AD患者: ### ↓ 明显降低 ### CCKBR-Gi信号: ### 重度AD患者: ### ↑ 增强 ### 提示: ### AD进展过程中,CCKBR信号发生偏移:有益的Gq信号下降,而Gi信号增强。 ### 9. AD患者CCK8s减少导致Gq下降 ### 质谱分析CSF中的CCK肽: ### 检测: ### CCK8s ### CCK4 ### 结果: ### CCK8s: ### 重度AD: ### ↓↓降低 ### CCK4: ### 重度AD: ### ↑升高 ### 原因: - CCK8s倾向激活Gq; - CCK4可能产生不同G蛋白偏向。 ### 因此: ### AD晚期由于CCK8s减少,而CCK4增加,导致CCKBR-Gq活性下降。 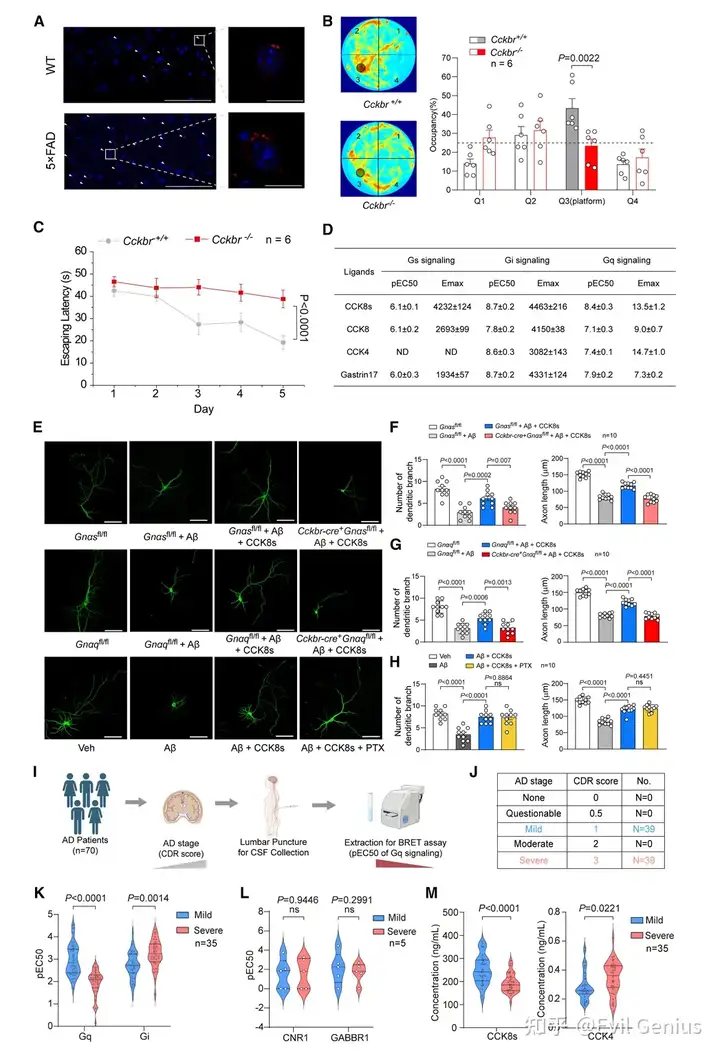 ### 结果2、CCK8s-CCKBR-G蛋白复合物结构解析 ### 冷冻电镜解析CCKBR不同G蛋白复合物结构 ### 研究者解析了3种CCK8s-CCKBR复合物结构: ### CCK8s-CCKBR-Gq ### CCK8s-CCKBR-Gs ### CCK8s-CCKBR-Gi1 ### 分辨率分别达到: ### Gq:3.3 Å ### Gs:3.0 Å ### Gi:3.1 Å ### 虽然已有胃泌素(gastrin-17)-CCKBR-Gi/Gq结构,但: ### gastrin-17主要存在于胃肠道; ### CCK8s主要富集于脑内,并且激活CCKBR-Gq/Gs能力更强。 ### 因此,采用CCK8s-CCKBR-Gs/Gq/Gi结构研究脑内CCKBR信号偏向机制。 ### CCK8s不同结合模式决定G蛋白偏向性 ### 三种复合物中,CCK8s均呈现类似: ### “倒置鱼钩(inverted fish hook)”结构 ### C端F8深入受体结合口袋底部。 ### 不同区域的CCK8s-CCKBR相互作用决定不同G蛋白选择性。 ### CCK8s N端区域(T区域)决定Gs偏向 ### 位置: ### CCK8s前3个氨基酸: ### D1 ### Y2 ### M3 ### 作用: ### 突变D1/Y2/M3后: ### → Gs激活能力下降最明显 ### 而Gi、Gq影响较小。 ### 关键相互作用: ### CCK8s: ### Y2 ### M3 ### 与CCKBR: ### P114 ### Q204ECL2 ### H364ECL3 ### 形成较强结合。 ### 突变这些受体残基: ### P114A ### Q204A ### H364A ### 导致: ### → Gs信号显著下降。 ### 结论: ### CCK8s N端区域与CCKBR P114/Q204/H364形成热点,是CCKBR-Gs选择性激活的关键。 ### CCK8s中间区域(M区域)决定Gq偏向 ### 关键残基: ### M6 ### D7 ### 突变: ### M6A ### D7A ### 结果: ### → 主要降低Gq信号 ### 对Gs和Gi影响较小。 ### 关键结合位点: ### CCK8s: ### M6 ### D7 ### 结合CCKBR: ### F110²·⁶⁰ ### H207ECL2 ### N353⁶·⁵⁵ ### 突变: ### F110A ### H207F ### N353A ### 导致: ### → Gq激活能力明显降低。 ### 结论: ### CCK8s中间区域与F110/H207/N353相互作用,是CCKBR-Gq选择性的结构基础。 ### CCK8s C端区域(B区域)决定Gi偏向 ### 关键残基: ### F8 ### 作用: ### F8与: ### W346⁶·⁴⁸ ### 形成结合, ### 并通过: ### Y350⁵·⁵² ### 间接稳定。 ### C端还与: ### T111²·⁶¹ ### H376⁷·³⁹ ### 形成极性相互作用。 ### 突变: ### F8A ### T111A ### H376A ### Y380A ### 结果: ### → 选择性削弱Gi信号 ### 不同区域对应不同G蛋白偏向 |CCK8s区域|关键残基|主要影响信号| | --- | --- | --- | |T区域(N端)|D1/Y2/M3|Gs| |M区域(中间)|M6/D7|Gq| |B区域(C端)|F8|Gi| ### 研究意义 ### 结构和功能实验共同证明: ### CCKBR不同构象状态决定G蛋白选择性; ### 配体与受体不同区域的相互作用决定信号偏向。 ### 因此可以通过: ### 靶向CCKBR特定结合区域 → 设计偏向性激动剂 ### 例如: ### Gs偏向激动剂 ### Gq偏向激动剂 ### Gi偏向激动剂 ### 用于精准调控AD相关神经功能。  ### 结果3、基于结构设计CCKBR-Gi偏向性激动剂(Lyz-866和z-44) ### 设计思路 ### 为研究CCKBR-Gi信号功能,作者设计Gi偏向性激动剂。 ### 由于删除CCK8s前4个氨基酸可: ### 消除CCKAR激活; ### 保留CCKBR活性; ### 因此选择CCK4(W5-M6-D7-F8)作为模板,开发CCKBR选择性激动剂。 ### Lyz-866的设计与优化 ### 计算模拟发现: ### 对CCK4 N端进行乙酰化(Ac-CCK4)可增强其与CCKBR H364ECL3的氢键作用; ### Gi信号激活能力提高约2.5倍。 ### 在苯丙氨酸(F8)侧链引入溴原子形成 Lyz-866: ### 活性提高约8倍(EC50≈0.27 nM); ### 生物利用度提高; ### 对CCKBR具有选择性。 ### 功能实验显示: ### Lyz-866是CCKBR Gi偏向性激动剂。 ### Lyz-866结构机制 ### 冷冻电镜解析: ### Lyz-866与CCK8s的W5-M6-D7-F8区域具有类似构象。 ### 但存在增强作用的关键相互作用: ### ① N端乙酰基: ### 与CCKBR H364ECL3形成额外氢键; ### ② 主链: ### 与 V206ECL2形成额外作用; ### ③ C端溴代苯环: ### 旋转约30°; ### 与疏水口袋形成更强堆积。 ### 突变H364或V206: ### → 显著降低Lyz-866活性。 ### 说明这些位点决定Lyz-866增强活性。 ### 进一步设计高度Gi偏向激动剂z-44 ### 问题: ### Lyz-866虽然偏向Gi,但仍与: ### H207ECL2(Gq相关位点) ### H3767.39/Y3807.43(Gi相关位点) ### 同时作用。 ### 设计策略: ### 删除Lyz-866 N端两个残基; ### 减少与H207ECL2(Gq相关)的作用; ### 优化D7和F8结构。 ### 最终获得: ### z-44 ### 特点: ### 完全失去: ### Gs激活能力; ### Gq激活能力; ### 保留: ### Gi激活能力。 ### 因此: ### z-44是高度Gi偏向性的CCKBR激动剂。 ### z-44结构基础 ### cryo-EM显示: ### z-44采用类似Lyz-866 C端D7-F8的线性构象; ### 位于配体结合口袋底部。 ### 关键作用: ### D7替换为羟基苯结构后: ### 增强与H3767.39和Y3807.43结合; ### 诱导这两个残基重新定位; ### 强化Gi信号。 ### CCKBR选择性的结构基础 ### Lyz-866和z-44: ### 激活CCKBR; ### 不激活CCKAR。 ### 原因: ### CCKBR特异残基: ### TM3区域: ### M1343.32 ### V1383.36 ### TM6区域: ### H3767.39 ### Y3807.43 ### 决定CCKBR选择性。 ### 突变这些位点: ### → z-44和Lyz-866活性下降。  ### 结果4、基于结构设计CCKBR-Gq偏向性激动剂3r1 ### 设计思路:利用Lyz-866结构开发Gq偏向激动剂 ### 作者解析了 Lyz-866-CCKBR-Gq复合物结构,以Lyz-866为模板设计Gq偏向性激动剂。 ### 重点保留核心药效区域: ### W5 ### M6 ### D7 ### 作为Gq激活的结构基础。 ### Lyz-866结合CCKBR-Gq与Gi存在构象差异 ### 比较Lyz-866-CCKBR-Gq和Lyz-866-CCKBR-Gi结构发现: ### D7侧链旋转约60° ### 伴随R356⁶·⁵⁸远离W5; ### 改变受体构象。 ### M6附近疏水作用重新排列: ### F110²·⁶⁰ ### F120ECL1 ### F122ECL1 ### 与M6相互作用减少。 ### C端F8-Br旋转约35°; ### 引起CCKBR构象开关残基变化: ### W346⁶·⁴⁸ ### H376⁷·³⁹ ### Y380⁷·⁴³ ### 说明: ### 配体诱导CCKBR不同构象,是G蛋白偏向性的结构基础。 ### 基于Lyz-866筛选Gq偏向性化合物 ### 作者对Lyz-866进行结构改造: ### W5位点优化: ### 替换: ### 苯丙氨酸(W5) ### 亮氨酸 ### 丙氨酸 ### 得到: ### a1-a3 ### 结果: ### → CCKBR活性明显下降。 ### D7位点优化: ### 替换: ### 氨基丙二酸 ### 谷氨酸 ### 组氨酸 ### 得到: ### c1-c3 ### 结果: ### → 活性降低。 ### 说明: ### W5和D7对CCKBR激活非常关键。 ### 4. 发现高效Gq偏向激动剂3r1 ### 关键改造: ### 将M6替换为: ### DL-norleucine(DL-正亮氨酸) ### 获得: ### 3r1 ### 特点: ### Gq激活能力提高约1000倍; ### EC50 = 0.035 ± 0.003 nM; ### 最大效应(Emax): ### 约为CCK8s的159%; ### 同时: ### Gi激活基本不变。 ### 因此: ### 3r1是CCKBR高度Gq偏向性激动剂。 ### 偏向因子: ### β = 0.99 ± 0.20 ### 5. 3r1-CCKBR-Gq结构揭示Gq偏向机制 ### 冷冻电镜解析: ### M6→DL-norleucine改变 ### 导致: ### 与V130³·²⁸、M134³·³²疏水作用消失; ### 更靠近T111²·⁶¹; ### 整个配体上移约1 Å。 ### 结果: ### 增强: ### D7与H207ECL2; ### D7与R356⁶·⁵⁸ ### 相互作用; ### 减少: ### 与N353⁶·⁵⁵作用。 ### F8-Br构象变化 ### F8-Br旋转约150°: ### 减少: ### Br与V349⁶·⁵²/Y350⁶·⁵³作用; ### 增加: ### Br与: ### M186⁴·⁵⁷ ### Y189⁴·⁶⁰ ### L222⁵·⁴² ### 相互作用。 ### 6. 3r1关键结合热点 ### 突变实验发现: ### 以下残基决定3r1高活性和Gq偏向: ### Y189⁴·⁶⁰ ### H207ECL2 ### R356⁶·⁵³ ### 这些位点增强: ### CCKBR结合亲和力; ### Gq信号激活。  ### 结果5、3r1通过上调ADAM10和PLCB4发挥其有益作用 ### 体外实验:3r1浓度依赖性地提高Aβ42处理的神经元存活率,促进神经元分支和轴突生长,而z-44无保护作用。 ### 体内行为学:长期给予3r1能显著改善5×FAD小鼠在水迷宫和新物体识别实验中的学习记忆能力,而z-44和CCK8s无效。 ### 突触功能:3r1和CCK8s均能挽救AD小鼠海马长时程增强(LTP)的损伤。 ### Tau病理:3r1能显著降低AD小鼠皮层磷酸化Tau水平,而z-44和CCK8s无此效应。 ### 结论:Gq偏向性CCKBR配体3r1通过减轻神经元凋亡、改善突触可塑性和降低Tau磷酸化,有效缓解AD模型小鼠的学习记忆障碍,而Gi偏向性配体z-44无效,提示Gq信号通路在CCKBR介导的AD治疗中起关键作用。  ### 结果6、3r1改善AD模型小鼠认知功能的分子机制 ### 减轻Aβ病理:3r1显著减少5×FAD小鼠脑内淀粉样斑块数量。 ### 转录组分析:3r1上调海马中“钙信号通路”和“cGMP-PKG通路”相关基因,下调“AD通路”相关基因。 ### 调控分泌酶平衡:3r1特异性上调α-分泌酶(ADAM10)的表达和活性(mRNA和蛋白水平均升高),增加无毒性的sAPPα生成,而对β-和γ-分泌酶无影响;使用ADAM10抑制剂可阻断3r1的神经保护效应。 ### PLCB4是关键下游分子:3r1通过CCKBR-Gq信号上调Plcb4表达;敲低Plcb4可阻断3r1对神经元分支、轴突生长和抗凋亡的保护作用。 ### 信号通路完整链条:3r1 → CCKBR → Gq → PLCB4 → ADAM10上调 → 减少Aβ生成 + 促进神经元生长 → 改善认知功能(图7总结)。 ### 抗炎作用:3r1还降低了海马中促炎基因的表达。 ### 结论:3r1通过激活CCKBR-Gq-PLCB4-ADAM10信号轴,同时发挥抗Aβ病理、促神经元存活和抗炎等多重效应,从而在AD模型中实现认知保护。这进一步证实了Gq偏向性CCKBR信号在AD治疗中的关键地位。   ### 最后,来看看方法 ### 分子对接  ### 分子动力学   ### 生活很好,有你更好。