知识扩展--PD-1阻断后肿瘤浸润浆细胞谱系分析揭示肿瘤特异性抗体
### 作者,Evil Genius ### 多组学在路上,能帮助我们看清很多的生物学问题。 ### 单细胞 + BCR + 空间 + 结构生物学 + 分子对接,单细胞空间发现生物学问题,结构生物学辅助我们解决生物学问题。 ### 今日参考文献  ### 知识积累 ### 肿瘤组织可形成含有CD138+浆细胞的三级淋巴结构,并从中利用表现出体细胞高频突变和类别转换的B细胞受体(BCRs)克隆出重组单克隆抗体(mAbs)。其中数个单克隆抗体可结合细胞表面的瓜氨酸化蛋白,这是癌细胞的特征之一。 ### TIL-Bs的重要性:肿瘤浸润B细胞(TIL-Bs)在抗肿瘤免疫和抑制肿瘤进展中起关键作用,功能包括抗原呈递、T细胞调节及抗体分泌。 ### 临床相关性:TIL-Bs及三级淋巴结构(TLS)丰度与多种癌症(包括NSCLC)的更好生存率和治疗应答相关;PD-1/PD-L1阻断不仅影响T细胞,也影响B细胞应答。 ### 浆细胞与PD-1阻断:抗PD-1治疗后,肿瘤内CD138+浆细胞浸润增加,并与NSCLC患者更好的临床结局相关,但其具体抗肿瘤作用尚不明确。 ### 单细胞技术的应用:利用单细胞RNA测序(scRNA-seq)可高分辨率地表征TME中B细胞各亚群(初始、活化、生发中心、记忆、非典型记忆及抗体分泌浆细胞),但各亚群BCR的肿瘤抗原特异性研究仍不足。 ### CAR-T疗法的挑战:CAR-T细胞治疗实体瘤面临抗原特异性不足(易脱靶)和肿瘤微环境免疫抑制(髓系细胞、成纤维细胞阻碍T细胞浸润和持久性)等主要障碍。 ### 研究的策略:利用新辅助PD-1阻断治疗的NSCLC患者肿瘤样本,基于肿瘤浸润浆细胞的BCR序列克隆重组单克隆抗体,并通过高通量技术对单个细胞的BCR配对可变区进行测序和功能筛选。 ### 关键发现: ### 获得的抗体可识别经翻译后修饰后在细胞表面特异性表达的肿瘤抗原。 ### 基于先导抗体PC-1的BCR构建的CAR-T细胞,能在体内特异性杀伤肿瘤细胞和促肿瘤髓系细胞,且无脱靶毒性。 ### 敲除瓜氨酸化酶PADI2可消除抗原反应性和CAR介导的杀伤,提示该修饰途径是关键靶点。 ### 结论:研究为挖掘肿瘤浸润浆细胞来源的抗体库以开发新型肿瘤免疫治疗提供了有力的概念验证支持。 ### 结果1、PD-1阻断后NSCLC肿瘤中的浆细胞积聚 ### 研究背景与样本来源 ### 基于TOP1501临床试验(NCT02818920,单臂II期),评估帕博利珠单抗新辅助治疗IB–IIIA期NSCLC患者。 ### 从术后切除标本中筛选出5例存在TIL-Bs且样本充足的病例(001、004、006为石蜡包埋;004、201、301为解离肿瘤)用于本研究。 ### 核心技术平台 ### CODEX(Co-Detection by Indexing)多重免疫荧光成像平台:用于对组织切片进行高维空间表型分析,实现多种细胞表面和胞内标志物的同步检测与空间定位。 ### 生物信息学与空间分析方法 ### 细胞邻域分析(Cell-type Neighborhood Analysis):将TLS内的细胞按空间位置划分为连贯的“斑块”(patches),据此评估不同细胞类型在TLS中的空间分布和相互作用。 ### TLS成熟度量化指标:基于B细胞富集程度和Ki67增殖指数(作为增殖活性标志物),将TLS分为三类: ### 未成熟TLS ### 静止成熟TLS ### 增殖成熟TLS ### 通过空间聚类方法,将TLS分组并比较各组间Ki67表达的统计学差异。 ### 主要实验发现 ### 与治疗前穿刺活检相比,治疗后切除肿瘤中存在大量TLS,且包含成熟TLS结构(GC CD4+ T细胞 + Ki67⁺CD20⁺ B细胞,外周包绕CD138⁺CD38⁺ ASCs)。 ### 提示TLS内存在T–B细胞间交互作用,推动TIL-B多样化及抗体分泌浆细胞(ASCs)生成。 ### 观察到CD138⁺CD38⁺ ASCs在肿瘤间质和实质中广泛积聚,提示这些细胞在TME中可能具有未被充分认识的功能。 ### 统计与临床关联 ### 增殖成熟TLS的Ki67表达显著高于静止成熟和未成熟TLS(图1F;表S3)。 ### 不同标本间TLS成熟度差异小,且与病理学缓解率无显著关联(图S1I、S1J),分析认为可能与手术切除标本中组织采样变异性有关。 ### 整体结论 ### PD-1阻断后的TME可能营造了一个支持肿瘤内B细胞发育和浆细胞分化的微环境,为后续挖掘B细胞来源的抗肿瘤抗体和CAR-T疗法提供了空间病理学基础。   ### 结果2、NSCLC中总TIL-B细胞群体的单细胞谱系分析 ### 研究目的 ### 在发现NSCLC切除标本中存在成熟TLS后,进一步在单细胞水平上定义TME中TIL-B的表型分化和克隆特征。 ### 样本与单细胞技术平台 ### 样本来源:TOP1501试验中3例患者的解离肿瘤标本(患者004和301为CD138-分选;患者201为CD19富集)。 ### 核心平台:单细胞转录组测序(scRNA-seq),对分选后的TIL-Bs进行全转录组分析。 ### BCR测序:同时进行配对重链和轻链全长可变区测序,实现BCR序列与转录组数据的联合分析。 ### 生物信息学分析方法 ### 细胞注释:使用Azimuth扁桃体参考数据集对25个聚类中的7,150个TIL-Bs进行注释和比对。 ### 细胞分群:基于典型标志物基因表达,鉴定出7个主要B细胞亚群: ### 初始样B(TCL1A⁺, YBX3⁺, FCER⁺, IGHD⁺) ### 活化初始B(CD83⁺, MIR155HG⁺, NFKB1⁺, CD69⁺) ### 周期B(MKI67⁺, STMN1⁺, HMGB2⁺) ### GC B(BCL6⁺, AICDA⁺) ### 记忆B(CD27⁺, TNFRSF13B⁺) ### AtM B(DUSP4⁺, FCLR5⁺, ZEB2⁺, ITGAX⁺) ### ASC/浆细胞(MYDGF⁺, JCHAIN⁺, XBP1⁺, MZB1⁺) ### 基因集富集分析:基于基因集的分子表型验证,确认各亚群与典型B细胞群体基因表达特征一致。 ### BCR谱系分析:将BCR序列与scRNA-seq数据整合,得到5,281对功能性重轻链配对;鉴定39个跨亚群共享克隆谱系,其中12个以重组mAb形式表达,证明肿瘤内存在B细胞分化和克隆扩增。 ### 主要发现 ### 同型分布:初始样B以IgM/IgD为主;GC、MBC、AtM和ASC显示多种同型(IgG/IgA等),表明发生了类别转换。 ### SHM特征:初始样B的SHM频率较低;GC、MBC和ASC的SHM频率显著较高,提示亲和力成熟过程活跃。 ### V基因使用:各亚群间在可变重链、κ/λ轻链基因家族使用上无显著差异。 ### 克隆共享:跨亚群存在共享克隆谱系,证实TIL-B在TME内经历克隆扩增和谱系分化。 ### 局限性说明 ### 由于本数据集TIL-B总数相对较少(n=7,150),未对活化初始、GC、MBC和ASC等群体进行进一步的亚分类,这与使用更大数据集的先前研究有所不同。 ### 整体结论 ### 单细胞水平的分析揭示了NSCLC TME中TIL-B具有完整的分化谱系(从初始B→GC→记忆/AtM→ASC),并伴随类别转换、SHM和克隆扩增,提示TIL-B在肿瘤内经历了抗原驱动的成熟过程,为后续克隆功能性抗体和开发CAR-T提供了B细胞受体序列基础。   ### 结果3、来源于不同TIL-B细胞群体的抗体的肿瘤反应性 ### 研究目的 ### 探究NSCLC中PD-1阻断后扩增的肿瘤浸润ASCs的免疫遗传学特征,并评估不同TIL-B亚群来源抗体的肿瘤抗原反应性。 ### 样本与实验技术平台 ### 细胞富集:从解离肿瘤中富集CD138+ B细胞(浆细胞)。 ### BCR测序:对配对的重链(VH)和轻链(Vκ/Vλ)基因进行测序,获得BCR全长可变区序列。 ### 抗体生产:通过重组技术表达单克隆抗体(mAbs)。 ### 抗原结合检测:使用免疫荧光染色对NSCLC细胞系(Calu-6、A549)进行细胞表面抗原结合检测。 ### 生物信息学与分析方法 ### BCR克隆型分析:定义独特BCR克隆型,通过每个克隆型包含的成员数评估克隆扩增程度。 ### 免疫遗传学参数计算: ### VH和Vκ/Vλ基因的突变频率(体细胞高频突变SHM率) ### HCDR3长度(重链互补决定区3,与抗原结合特异性相关) ### 同型(isotype)分布(IgG1、IgA1等类别转换情况) ### V基因家族使用偏好(VH3、Vκ1、Vλ3等) ### 跨亚群抗体筛选策略:不仅从扩增最大的ASC克隆型中选择抗体,还从GC、MBC、AtM以及扩增较小但突变广泛/高度多样化的ASC谱系中选取抗体,以全面评估各亚群的肿瘤反应性。 ### 主要发现 |分析内容|结果| | --- | --- | |ASC克隆扩增|患者004有1,353个独特克隆型,患者301有1,671个,均存在多成员克隆型,证实克隆扩增| |V基因使用偏好|VH3、Vκ1、Vλ3最为常见| |SHM突变|肿瘤来源VH/Vκ/Vλ基因均存在突变,提示抗原驱动成熟| |类别转换|ASC以IgG1为主(60.5%/43.3%),其次为IgA1,均已完成类别转换| |初始15种ASC来源mAb|11/15(73%)结合Calu-6细胞表面抗原| |额外29种跨亚群mAb(含GC/MBC/AtM及多样性ASC)|15/29(52%)结合A549细胞表面抗原,证明肿瘤反应性不仅限于ASCs,也存在于GC、MBC和AtM| |PC-1抗体特征|在所有29种mAb中细胞表面结合信号最强,且为ASC库中扩增最大的谱系之一(107个成员),SHM和类别转换特征显著| ### 关键结论 ### 肿瘤反应性抗体不仅来源于终末分化的ASCs,也广泛存在于GC B、记忆B和AtM B等抗原经历过的B细胞亚群中。 ### PC-1因其最强的抗原结合活性和显著的克隆扩增/成熟特征,被选为后续研究的先导抗体。 ### 研究意义 ### 提示在PD-1阻断后的NSCLC TME中,多个TIL-B亚群均携带肿瘤特异性BCR,为从不同B细胞亚群中挖掘抗肿瘤抗体提供了理论依据和实验支持。 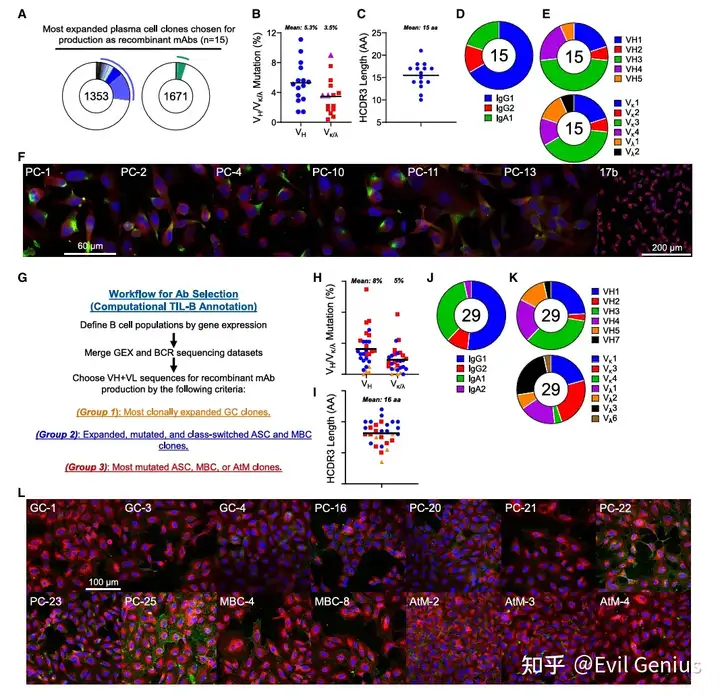 ### 结果4、瓜氨酸化波形蛋白是肿瘤抗体的共同靶标 ### 研究目的 ### 鉴定PC-1先导抗体所识别的肿瘤细胞表面抗原。 ### 评估PC-1及其他肿瘤来源抗体的自身反应性、多反应性和发育起源。 ### 抗原鉴定技术平台 ### 免疫沉淀(IP)+ 液相色谱-串联质谱(LC-MS/MS):从Calu-6细胞裂解液中富集PC-1结合的蛋白,鉴定出1,885种候选蛋白,经下选后确定波形蛋白为首要候选靶标。 ### ELISA/结合实验:验证PC-1与重组瓜氨酸化/未修饰波形蛋白、Hsp90、钙网蛋白、p53的结合特异性和亲和力(KD测定)。 ### HuProt人类蛋白质组微阵列(含23,004种蛋白及异构体):评估PC-1的全蛋白质组结合谱,定量多反应性(Z评分阈值)。 ### AtheNA-Multi-Lyte多重自身抗体检测平台(临床验证):检测PC-1对多种自身免疫病相关核抗原的反应性。 ### 正常组织微阵列(49个人类供体,多解剖部位):评估PC-1在正常组织中的结合分布。 ### 生物信息学与分析方法 ### 质谱候选蛋白下选策略:按STAR Methods所述流程,从1,885种蛋白中筛选出波形蛋白等核心靶标。 ### 结合亲和力计算:通过KD值定量PC-1与各抗原的结合强度。 ### Z评分标准化:HuProt微阵列中以Z评分>3定义为阳性结合,定量PC-1全蛋白质组结合比例(仅0.6%)。 ### 胚系回复(Germline reversion):将成熟PC-1的SHM回复为胚系序列,比较突变前后抗原结合能力,验证亲和力成熟的贡献。 ### 主要发现 |研究内容|结果| | --- | --- | |PC-1结合谱|结合肺、间皮、卵巢、子宫等多种肿瘤细胞系表面抗原,提示识别共享肿瘤抗原| |主要靶标鉴定|波形蛋白(vimentin)——以瓜氨酸化形式在细胞表面表达| |其他靶标|瓜氨酸化/未修饰的Hsp90、钙网蛋白、p53;多种肿瘤mAb均对瓜氨酸化钙网蛋白有反应性| |结合亲和力(KD)|瓜氨酸化波形蛋白:1.93×10⁻⁸ M;钙网蛋白:1.89×10⁻⁸ M;p53:1.36×10⁻⁸ M(均为纳摩尔级高亲和力)| |血浆抗体检测|患者血浆抗瓜氨酸化抗原抗体与正常对照无差异,PD-1阻断后滴度未升高,提示反应局限于TME局部;与病理缓解无相关性| |环瓜氨酸化肽(CCP)结合|PC-1及其他9种抗体均不结合CCP,与类风湿关节炎相关自身抗体不同| |自身抗原反应性(AtheNA平台)|PC-1无系统性红斑狼疮、干燥综合征、硬皮病等相关核抗原反应性| |临床自身免疫表现|患者004无类风湿关节炎表现;出现肺炎/支气管炎(激素可逆),可能与免疫相关不良事件有关| |正常组织结合(微阵列)|PC-1对甲状腺上皮有结合,其他组织胞质抗原有变异性结合| |全蛋白质组多反应性(HuProt)|仅0.6%(23,004种中)蛋白结合超过阈值,多反应性极低| |胚系回复实验|胚系PC-1对瓜氨酸化抗原仅低水平结合,成熟PC-1结合显著增强,表明在TME中经历了SHM驱动的亲和力成熟| ### 关键结论 ### PC-1识别瓜氨酸化波形蛋白等翻译后修饰抗原,这是一类在多种肿瘤细胞表面共享的肿瘤抗原。 ### PC-1具有高亲和力、低自身反应性和低多反应性,具有良好的治疗抗体开发潜力。 ### 肿瘤反应性抗体的亲和力成熟发生在肿瘤微环境(TME)局部,而非系统性免疫应答。 ### 从TIL-B来源抗体中挖掘靶向瓜氨酸化肿瘤抗原的策略,为开发新型肿瘤免疫治疗提供了新思路。 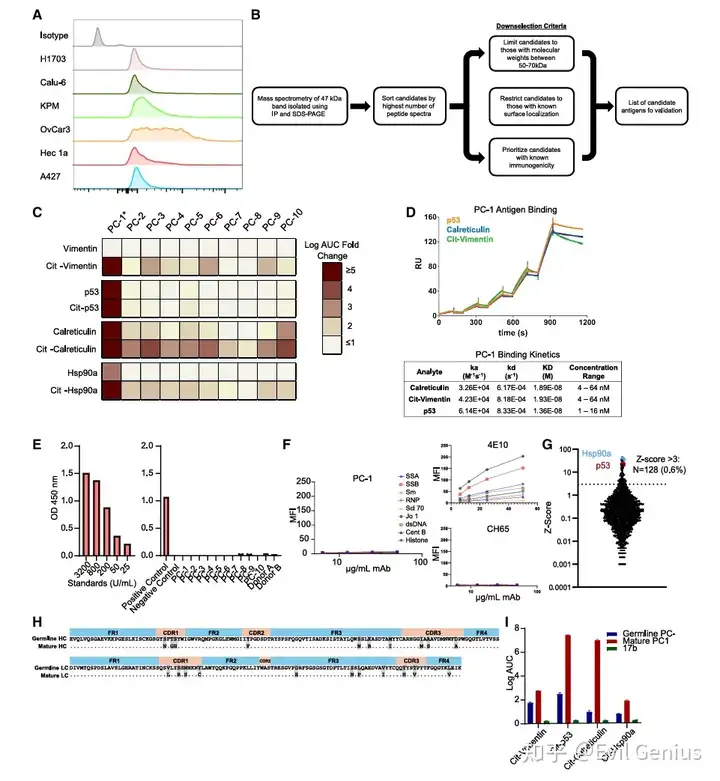 ### 结果5、PC-1表位和结构的测定 ### 研究目的 ### 确定PC-1抗体在钙网蛋白(CALR)和p53上的具体表位(结合区域)。 ### 解析PC-1 Fab片段的晶体结构,从分子层面理解其抗原识别机制。 ### 实验技术平台 |技术方法|用途| | --- | --- | |表面等离子体共振(SPR)/生物层干涉(BLI)|测定PC-1与全长/截短蛋白及结构域的结合亲和力(KD)| |X射线晶体学|解析无配体(apo)PC-1 Fab的三维结构,分辨率2.2 Å| |AbEpiTope-1.0计算建模|模拟PC-1 Fab与CALR P结构域/p53核心结构域的对接,预测抗原-Fab接触残基和相互作用模式| ### 生物信息学与结构分析方法 ### 结构域截短结合实验:通过构建CALR的NP(N+P)和NC(N+C)截短体,以及p53的核心结构域,定位PC-1结合区域。 ### CDR序列与结构分析:分析PC-1的HCDR2(17 aa)、HCDR3(15 aa)和LCDR1(17 aa)的长度、残基组成(芳香族/疏水/极性残基),推断其结合表面特征。 ### 计算对接模拟:使用AbEpiTope-1.0预测Fab-抗原复合物结构,识别关键相互作用的氨基酸残基(如重链D55/D57与P结构域K248的双齿氢键;重链R59和轻链Y98与两种抗原均有相互作用)。 ### 主要发现 |研究内容|结果| | --- | --- | |p53结合表位|PC-1结合p53的DNA结合核心结构域,但亲和力(μM级)远低于全长p53(nM级),提示核心结构域单独存在时构象可能改变,或需要其他区域协同| |CALR结合表位|PC-1结合CALR-NP构建体,不结合NC构建体;结合P结构域,亲和力与全长CALR相似(nM级),表明P结构域是主要识别位点| |表位定位结论|CALR的P结构域和p53的核心结构域为PC-1的主要结合区域| |Fab晶体结构(2.2 Å)|CDR环长度延伸(HCDR2:17aa, HCDR3:15aa, LCDR1:17aa),富含大疏水残基和极性残基(轻链Y31/Y98/H98/Y102;重链W33/W110),形成能容纳多样化表位的结合表面| |计算建模预测|- 重链CDR2的D55和D57与P结构域的K248形成双齿氢键- 重链R59和轻链Y98同时参与P结构域和p53核心结构域的结合,提示共享表位识别模式| ### 关键结论 ### PC-1通过其延长的CDR环和独特的疏水/极性残基组合,形成一个能识别多样化抗原结构的结合表面。 ### PC-1识别CALR P结构域和p53核心结构域,可能通过共享的构象特征(如重链R59和轻链Y98介导的相互作用)实现跨抗原结合。 ### 最终表位确证需要抗原结合状态下的共晶结构,但当前数据支持PC-1识别不同肿瘤相关抗原间共有的构象表位这一假说。 ### 局限性 ### PC-1与P结构域的动力学分析因蛋白溶解性和聚集问题受阻。 ### Fab-抗原共结晶尝试未成功,表位信息主要依赖计算建模预测,需后续结构验证。 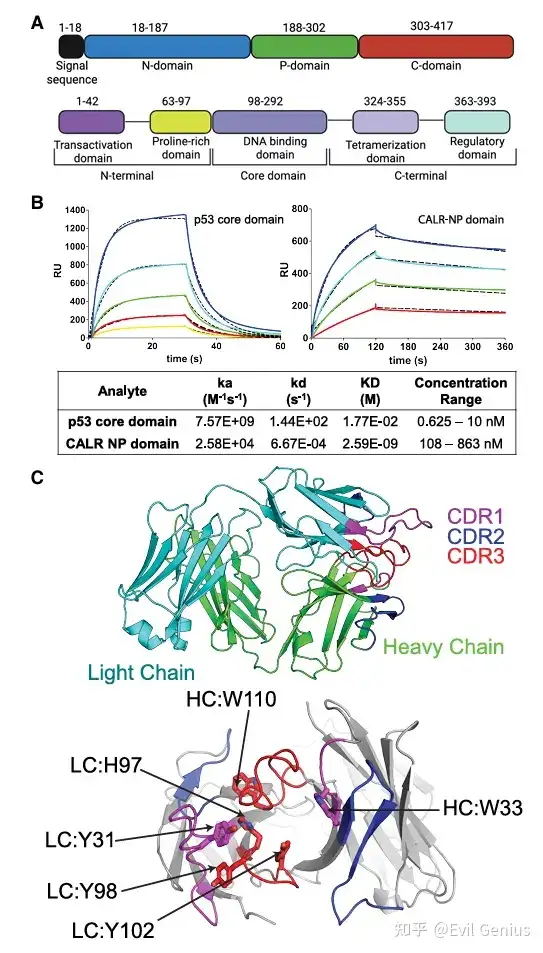 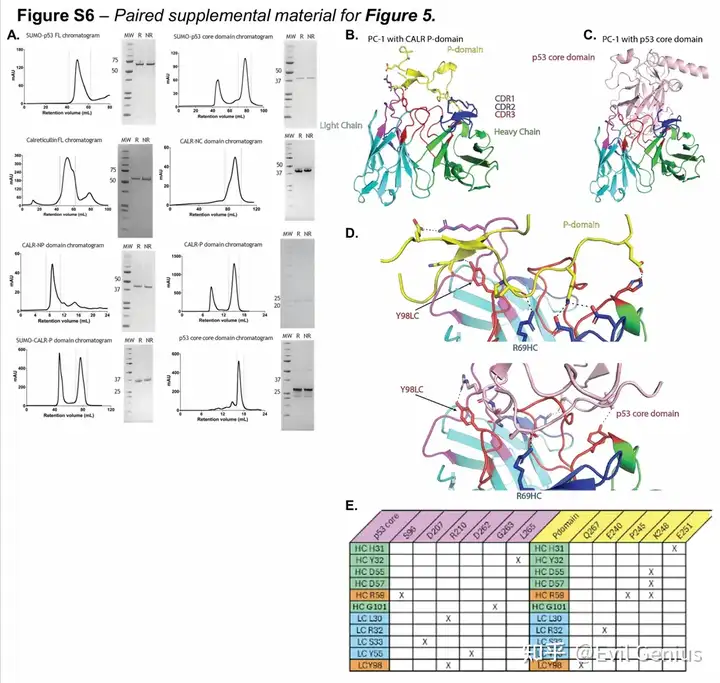 ### 结果6、人肿瘤细胞及肿瘤微环境中促肿瘤细胞内瓜氨酸化波形蛋白的表达增加 ### 研究目的 ### 验证PC-1抗体能否结合患者来源的原代肿瘤细胞(而非仅永生化细胞系)。 ### 评估PC-1在肿瘤微环境(TME)中是否识别非肿瘤但促肿瘤的细胞类型(如免疫抑制性髓系细胞等)。 ### 评估PC-1对健康供体正常免疫细胞是否具有交叉反应性(安全性评估)。 ### 样本来源与实验方法 |样本类型|来源/描述| | --- | --- | |原代肿瘤细胞|高级别浆液性卵巢癌(HGSOC)患者的手术解离肿瘤细胞,配对正常组织作对照| |促肿瘤免疫细胞|HGSOC肿瘤中的巨噬细胞、MDSCs、耗竭CD4⁺ T细胞| |促肿瘤基质细胞|NSCLC恶性胸水中的癌相关成纤维细胞(CAFs)| |正常免疫细胞对照|健康供体的PBMCs| ### 主要发现 ### PC-1 特异性结合患者来源的HGSOC原代肿瘤细胞,而不结合配对的正常组织细胞。 ### PC-1可结合多种促肿瘤微环境细胞类型: ### 促肿瘤巨噬细胞 ### 髓源性抑制细胞(MDSCs) ### 耗竭CD4⁺ T细胞 ### 癌相关成纤维细胞(CAFs) ### PC-1 不结合健康供体PBMCs中的免疫细胞,提示其在正常外周免疫细胞中无交叉反应性。 ### 关键结论 ### 瓜氨酸化波形蛋白及相关瓜氨酸化抗原不仅在肿瘤细胞表面表达,也在多种促肿瘤的免疫细胞和基质细胞表面表达。 ### PC-1的抗原识别谱覆盖了TME中多种促肿瘤细胞类型,使其具备双重潜力: ### 直接杀伤肿瘤细胞 ### 调控/清除促肿瘤微环境细胞(如免疫抑制性髓系细胞和CAFs) ### PC-1对健康供体PBMCs无结合,初步安全性良好。 ### 治疗开发意义 ### 该抗体的特异性(靶向瓜氨酸化蛋白)使其成为CAR-T疗法或抗体药物偶联物(ADC) 的理想候选,可同时靶向肿瘤细胞和促肿瘤微环境成分,具有协同抗肿瘤潜力。  ### 结果7、PC-1 CAR T细胞在体内特异性靶向肿瘤细胞和促肿瘤髓系细胞,且无脱靶活性 ### 研究目的 ### 验证以PC-1 scFv为识别元件的CAR T细胞是否能特异性杀伤肿瘤细胞和促肿瘤髓系细胞。 ### 评估PC-1 CAR T细胞在体内的抗肿瘤疗效和安全性(脱靶毒性)。 ### 技术平台与实验模型 |类别|具体方法/模型| | --- | --- | |CAR构建|从PC-1 mAb克隆scFv,构建CD28共刺激和4-1BB共刺激的CAR T细胞| |体外杀伤实验|Xcelligence实时细胞分析系统:检测CAR T细胞对Calu-6、A427(人NSCLC)、KPM、UPK10(小鼠肿瘤)的细胞毒性| |体内异种移植模型|NSG免疫缺陷小鼠:Calu-6/A427皮下荷瘤,评估人PC-1 CAR T抗肿瘤活性| |免疫健全同基因模型|B6小鼠原位UPK10模型:使用鼠源化PC-1 CAR T细胞,评估抗肿瘤疗效和生存获益| |腹水模型|ID8-Defb29/Vegfa原位卵巢癌模型(B6小鼠)| |PAD2机制验证|CRISPR/Cas9敲除A427细胞的PAD2基因,验证瓜氨酸化依赖性| |毒性评估|组织病理学(心、肝、脾、肺、肾、脑)+ 血清生化(肾、胰、肝功能标志物)| ### 主要发现 |实验内容|结果| | --- | --- | |体外人CAR T杀伤|CD28和4-1BB CAR T均有效杀伤Calu-6(细胞指数↓80%/92%)和A427(↓64%/60%)| |NSG异种移植模型|PC-1 CAR T显著抑制Calu-6和A427已建立肿瘤的生长| |PAD2依赖性验证|PAD2敲除后,PC-1表面结合从82.6%降至6.4%,CAR T杀伤完全消除 → 靶向依赖于PAD2介导的瓜氨酸化| |鼠源化CAR T体外杀伤|杀伤小鼠KPM(↓65%)和UPK10(↓44%)肿瘤细胞| |UPK10原位同基因模型|PC-1 CAR T治疗显著改善荷瘤小鼠生存(无需淋巴清除预处理)| |脱靶毒性评估(组织病理)|心、肝、脾、肺、肾、脑均未见组织损伤| |脱靶毒性评估(血清生化)|肾、胰、肝功能标志物与对照组无显著差异| |肿瘤内效应|PC-1 CAR T治疗组肿瘤显示广泛脂肪坏死(抗肿瘤活性的直接证据)| ### 关键结论 ### PC-1 CAR T细胞的抗肿瘤活性严格依赖于PAD2介导的细胞表面蛋白瓜氨酸化。 ### PC-1 CAR T细胞在免疫健全模型中有效控制肿瘤生长并延长生存期。 ### 安全性良好:在多个重要正常器官(心、肝、脾、肺、肾、脑)中未检测到脱靶组织损伤,血清生化指标正常。 ### PC-1 CAR T可同时靶向肿瘤细胞和促肿瘤髓系细胞/巨噬细胞,具有双重抗肿瘤机制。 ### 研究意义 ### 瓜氨酸化抗原(尤其是瓜氨酸化波形蛋白)是具有高度肿瘤选择性的CAR-T靶点。 ### PC-1 CAR T在实体瘤(NSCLC和HGSOC)模型中显示出良好的疗效-安全性平衡,为该靶点的临床转化提供了强有力的概念验证数据。  ### 最后,来看看方法  ### 单细胞数据分析   ### BCR数据分析  ### 蛋白结构预测  ### 生活很好,有你更好。